共显性在蛇类色素系统中的独特表现
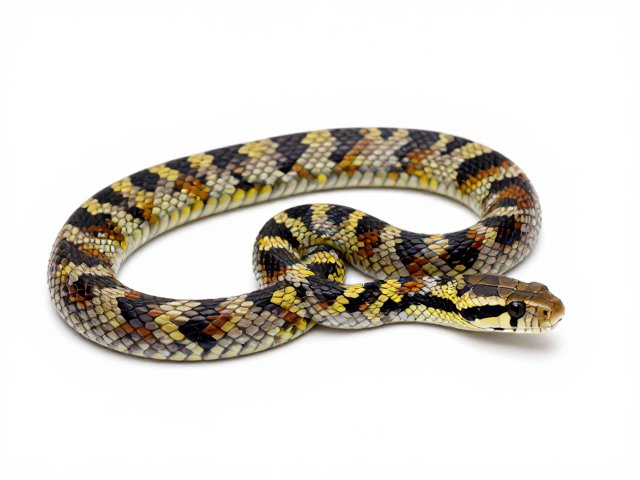
原色束带蛇(Thamnophis sirtalis)作为游蛇科中分布最广的物种之一,其体色变异一直是遗传学研究中的经典案例。在自然种群中,个体常同时表现出两种或多种等位基因编码的色素特征,这种现象即为共显性。与孟德尔遗传中常见的显性完全掩盖隐性不同,共显性意味着两个等位基因在杂合状态下均能独立表达其蛋白产物,最终在表型上呈现为两种颜色的并存或混合。对于束带蛇而言,黑色素(真黑素)与黄色素(类胡萝卜素衍生物)的合成路径受不同基因位点调控,当控制黑色斑纹的等位基因与控制黄色斑纹的等位基因同时存在且表现为共显性关系时,蛇身便不再呈现单一的纯色,而是形成黑白黄交错的复杂花纹。
这种遗传机制的发现修正了早期对蛇类色素遗传的简化认知。过去常误以为蛇色由单一基因座的多态性决定,但分子生物学证据显示,束带蛇的背纹模式涉及多个基因座的相互作用。在共显性模型中,杂合子个体并不像显性遗传那样完全掩盖隐性性状,而是像血型系统中的AB型一样,清晰展示双亲的遗传特征。具体到原色束带蛇,这意味着携带不同色素合成酶活性基因的个体,其皮肤黑色素细胞和黄色素细胞能够同时发育并分布,从而在宏观视觉上形成高对比度的条纹或斑点结构。这种视觉上的“双重表达”是理解蛇类适应性进化中伪装策略的关键切入点。
基因调控网络与表型形成的分子路径
束带蛇体色的形成依赖于发育过程中色素细胞迁移与分化的时间空域控制。研究表明,控制色素合成的关键基因如MITOSIAL、TYR等,其表达水平会受到上游调控因子的影响。在共显性机制下,来自父本和母本的两个等位基因所转录的mRNA会同时存在于发育中的黑色素细胞前体中。由于这些基因编码的酶活性可能存在差异,例如一个等位基因编码高活性黑色素合成酶,另一个编码低活性或修饰性酶,两者共同作用导致黑色素沉积模式的特异性。这种分子层面的共存并非简单的叠加,而是通过复杂的信号通路网络,决定了色素在鳞片特定区域的沉积密度和分布范围。
此外,表观遗传修饰也在共显性表达中扮演着重要角色。DNA甲基化和组蛋白乙酰化等机制会影响色素基因启动子区域的可及性,从而微调基因表达的水平。在束带蛇中,某些环境因素或发育信号可能通过表观遗传途径影响共显性等位基因的表达强度,使得同一基因型的个体在不同环境下表现出细微的表型差异。这种调控机制的精细性解释了为何野生束带蛇的体色具有极高的变异性,同时也为研究脊椎动物皮肤色素形成的保守机制提供了重要的模型。通过解析这些分子路径,科学家能够更准确地预测特定基因组合在自然选择压力下可能产生的表型结果。
自然选择压力与体色变异的生态关联
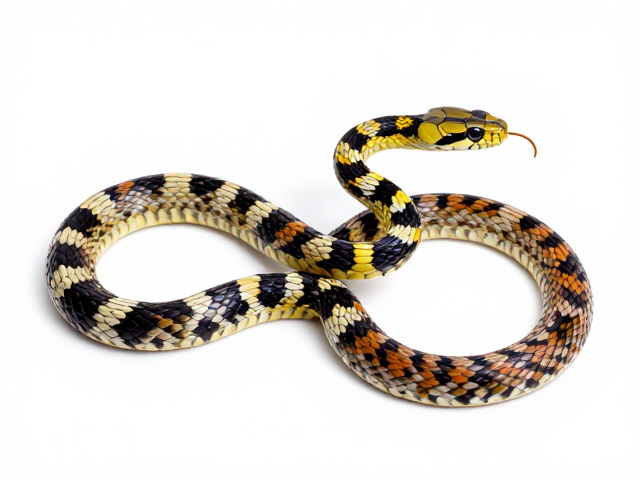
在野外环境中,束带蛇的体色变异并非随机存在,而是受到捕食压力和栖息地背景的强烈选择。共显性产生的多样化体型,如黑黄相间的条纹或斑点,增加了种内表型的多样性,从而提高了种群在异质环境中的整体适应潜力。在植被茂密、光线斑驳的林地环境中,复杂的共显性花纹能更好地模拟破碎的光影,降低被视觉捕食者发现的概率。相反,在开阔地带,某些纯色或简单条纹的个体可能更具优势。这种基于共显性产生的表型连续变异,使得束带蛇种群能够灵活应对环境变化,避免因单一表型劣势而导致种群衰退。
长期以来的野外观察和标记重捕实验为这一理论提供了数据支持。在不同地理区域的束带蛇种群中,研究者发现体色频率与当地植被颜色、温度以及捕食者群落结构存在显著的相关性。例如,在较冷的高海拔地区,深色个体比例较高,有助于吸收热量维持体温;而在温暖地区,浅色或杂色个体更常见。共显性机制确保了种群中始终存在丰富的遗传多样性储备,当环境发生剧烈变化时,某些原本不占优势的等位基因组合可能突然获得生存优势。这种动态平衡是束带蛇能够广泛分布于北美大陆,从加拿大南部延伸至墨西哥,甚至跨越多种气候带的重要遗传基础。