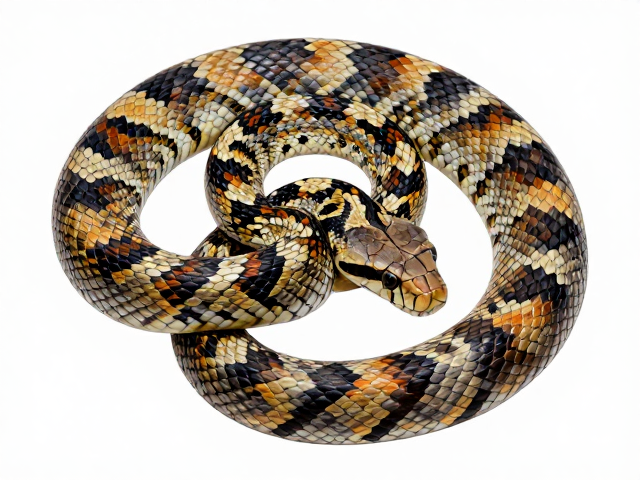
基因突变:蛇类色彩与纹理的分子基础
蛇类体表的绚丽色彩与复杂纹理,本质上是皮肤深层色素细胞分布与结构的结果。在分子生物学层面,这一过程主要由多个关键基因调控,其中MC1R基因扮演着核心角色。该基因编码的黑素皮质素受体1,负责调控真黑素与褐黑素的比例,从而决定基础色调。当MC1R基因发生特异性突变时,黑色素合成路径受阻或改变,导致蛇类失去原有的深色背景,呈现出黄色、红色或白色等“原色”特征。这种由单基因或少数基因位点控制的变化,是自然选择与人工干预共同作用下的微观体现。
除了基础色素基因,其他如KITLG和EDNRB等基因也在鳞片纹理的形成中发挥重要作用。这些基因影响着黑色素细胞在胚胎发育过程中的迁移、增殖及存活,进而决定了色素斑点的形状、大小以及分布密度。例如,某些特定突变会导致色素细胞完全缺失,形成纯白或黄色的体色;而另一些突变则可能使色素细胞聚集成特定的几何图案。这些细微的遗传差异,通过复杂的表观遗传调控网络,最终在成体蛇类的鳞片上呈现出千变万化的视觉效果,构成了蛇类独特外观的生物学基础。
选择性育种:人工干预下的表型强化与固化
人类对蛇类外观的偏好,推动了选择性育种在爬宠领域的长期发展。通过人为筛选具有特殊体色或纹理的个体进行交配,特定的基因组合得以在种群中逐步积累并固化。这一过程并非随机,而是基于严密的遗传学逻辑,旨在强化某些稀缺或美观的性状。例如,在玉米蛇或球蟒中,通过多代针对“无斑”或“异色”个体的筛选,逐渐培育出土偶、白化、超白等经典品系。这些品系的稳定性,依赖于育种者对隐性基因与显性基因传递规律的精准把握。
选择性育种不仅改变了蛇类的颜色,也深刻影响了其鳞片的光泽度与排列方式。在长期的人工选育中,某些品系因其鳞片结构更规则、反光性更强而备受青睐。育种者通过记录亲本性状与子代表现,建立严密的系谱档案,确保目标性状的可遗传性。这种基于数据的精细化育种,使得原本在自然界中可能因生存劣势而被淘汰的性状,在人工环境中得以保留并优化。结果是,市场上流通的蛇类个体,在外观特征上与野生种群形成了显著差异,展现出高度一致且符合审美预期的独特魅力。
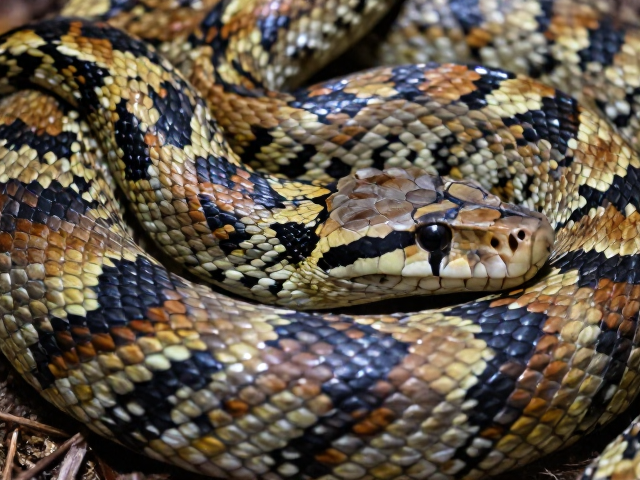
原色鳞片纹理的自然演化与人工筛选的交集
在自然生态系统中,蛇类的体色与纹理主要服务于伪装、警戒或求偶等生存功能。然而,某些看似不利于隐蔽的鲜艳色彩或特殊纹理,在人工饲养环境下却成为了珍贵的遗传资源。原色鳞片纹理的形成,是自然突变提供原材料,人工选择进行定向塑造的结果。自然界中偶尔出现的色素缺失或结构变异个体,虽然可能面临更高的捕食风险,但其独特的基因型被人类发现并珍视。通过隔离饲养与受控繁殖,这些稀有性状脱离了自然选择的压力,成为人工种群的标志性特征。
这种交集体现在基因型的稳定性与表型的多样性之间。人工育种保留了自然突变产生的复杂基因组合,并通过近交或杂交手段,筛选出国色、蓝眼白化等具有极高辨识度的纹理特征。这些特征并非单一基因的作用,而是多基因位点共同表达的结果。例如,某些特定纹理的出现,需要色素细胞分布基因与鳞片发育基因的同时变异。人工筛选确保了这些复杂组合能够稳定遗传,使得原色鳞片纹理成为一种可预测、可复制的生物学现象,丰富了蛇类在形态学上的表现形式。
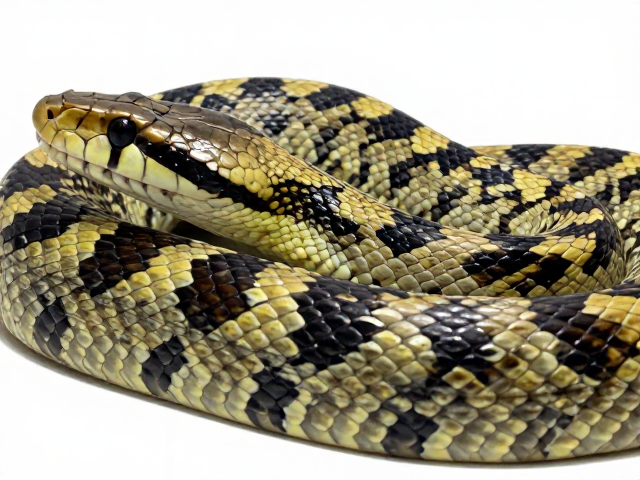
独特外观特征的科学解析与鉴定标准
蛇类独特外观的鉴定,依赖于严密的形态学分析与分子遗传学检测。专业爬行动物爱好者及研究人员通过观察鳞片排列、色素分布模式以及眼部特征,初步判断个体的基因型。例如,白化蛇缺乏真黑素,表现为红色眼睛和黄色或白色身体;而阿尔博ino蛇则同时缺乏真黑素和褐黑素,导致全身呈现白色,眼睛呈红色。这些表型特征的识别,是理解其遗传机制的前提。现代技术还允许通过基因测序,精准定位导致特定纹理的突变位点,为外观鉴定提供分子层面的证据。
随着研究的深入,蛇类外观特征的分类体系日益精细化。从最初的简单颜色描述,发展到如今基于基因位点的精准命名。例如,通过检测SATA(Super Anerythistic)基因位点,可以区分不同层次的“超”性状个体。这种科学化鉴定不仅提升了交易与交流的准确性,也促进了遗传学研究的进步。每一个独特的鳞片纹理背后,都是一组特定的基因序列及其表达结果。对这些特征的深入解析,有助于揭示脊椎动物皮肤发育与色素合成的通用机制,为生物学基础研究提供宝贵的模型。