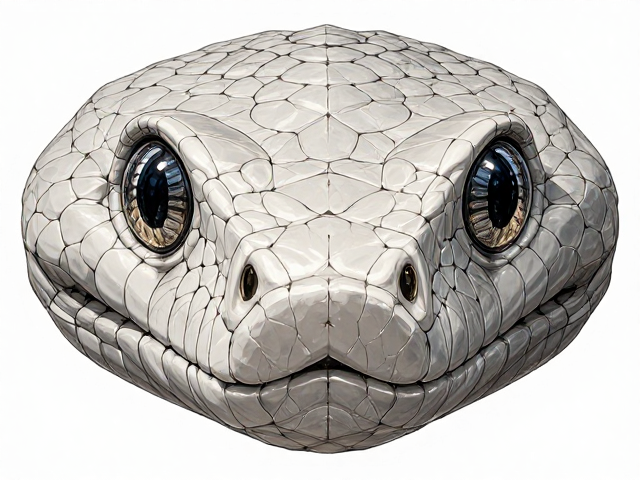
蛇类头部形态与感官适应
蛇类的头部结构在进化过程中展现出了极高的特化程度,这种形态上的多样性直接关联着其捕食策略与生存环境。不同科属的蛇类在头骨形态、鳞片排列以及感觉器官的分布上存在着显著差异,这些特征构成了识别物种的关键生物学指标。例如,游蛇科中许多物种具有较为宽扁的头部,而蝰科蛇类则常呈现明显的三角形头型,这种形态差异往往伴随着颌部肌肉结构及毒腺发育程度的不同。
在解剖学层面,蛇类头部缺乏活动性的上颌骨,这一特征使得其头骨在进食大型猎物时能通过特殊的关节活动实现扩张。这种结构特点限制了头部外形的绝对固定性,使得同一物种在不同生理状态下头部外观可能存在细微变化。然而,整体轮廓、吻端形状以及眼瞳形态等稳定性特征,依然是分类学中用于界定物种的重要依据,反映了不同生态环境对蛇类头部形态的长期自然选择压力。
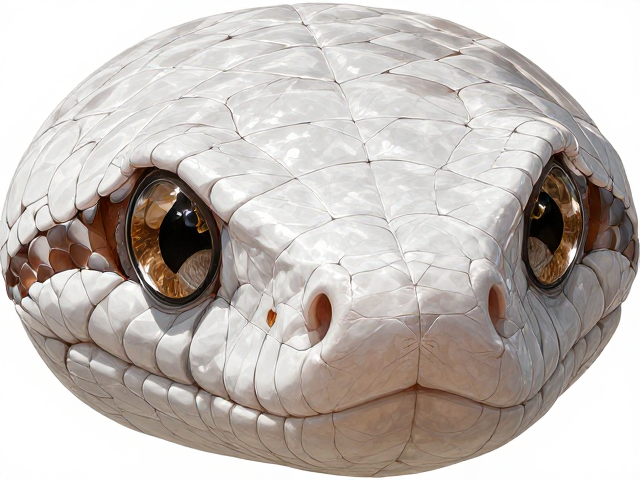
白化现象的生理机制与表现
白化现象在蛇类中表现为黑色素合成的阻断,这通常由酪氨酸酶基因突变引起,导致皮肤、鳞片及眼球中完全缺乏真黑素。这种遗传性色素缺失使得蛇类体表呈现出白色、黄色或淡粉色等基调,且由于血管颜色透过半透明的角质层显现,体表常带有色调变化。白化蛇类的眼部因缺乏色素遮挡,虹膜及眼底血管清晰可见,通常呈现红色或粉红色,这是区分白化个体与黄化个体的重要视觉特征。
从遗传学角度来看,白化性状多为常染色体隐性遗传,这意味着个体需要携带两个隐性等位基因才会表现出完整的白化表型。在人工繁育实践中,白化变异已被广泛选育,形成了如玉米蛇、王蛇等多个物种的白化变种。尽管外观上失去了伪装能力,但在受控环境中,这种性状因观赏价值高而被保留。自然界中,白化个体因缺乏隐蔽性,其生存率通常低于正常色素个体,这体现了自然选择对显性不利性状的淘汰机制。
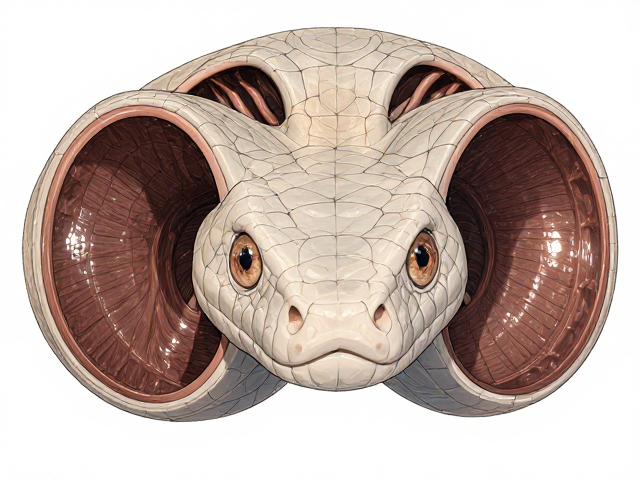
热敏颊窝的解剖结构与功能
热敏颊窝是蝮蛇科、蚺科等部分蛇类头部特有的感觉器官,位于眼与鼻孔之间的凹陷结构中。其内部包含高灵敏度的红外感应膜,膜上分布着密集的神经末梢,能感知周围环境中微小的温度变化,精度可达0.001摄氏度。这种器官使蛇类能够在完全黑暗的环境中构建猎物的热成像图,从而精确锁定恒温动物的位置,极大地提升了夜行性捕食的成功率。
颊窝的结构与三叉神经的眼支紧密相连,信号通过神经通路传递至脑部的视丘和下丘脑,与视觉信息整合形成复合感知。这种双重感官输入使得蛇类能区分热源与冷源,并判断其距离和大小。在进化过程中,颊窝的出现与蛇类向温血动物捕食者的生态位转变密切相关,是生物感官系统适应特定捕食压力的典型案例。然而,颊窝并非存在于所有蛇类,其分布具有明显的科属局限性。
白化个体与颊窝功能的关联分析
在涉及颊窝功能的蛇类物种中,白化变异主要影响表皮色素及眼部结构,而颊窝的红外感应机制依赖于膜内的血管网络与神经分布,这两套系统在生理发育上相对独立。因此,白化蛇类的颊窝在解剖结构上通常保持完整,其感知热辐射的能力并未因色素缺失而受到直接破坏。这意味着白化蝮蛇或白化蟒蛇在理论上仍具备利用红外感应进行捕食和防御的能力,尽管其视觉捕食因眼球色素缺失而受到显著干扰。
然而,感官系统的协同作用在捕食行为中至关重要。白化个体因缺乏视觉伪装和视觉定位能力,可能更依赖颊窝提供的热信号信息来弥补视觉缺陷。在自然状态下,这种感官补偿机制可能部分维持其生存效率,但由于白化个体在视觉上过于显眼,极易被猎物察觉或被天敌发现,导致其整体适应性降低。因此,白化现象与颊窝功能之间并非存在直接的生理退化联系,而是表现为不同感官系统在生存策略上的权衡与替代。