蛇类原色基因突变与选择性育种
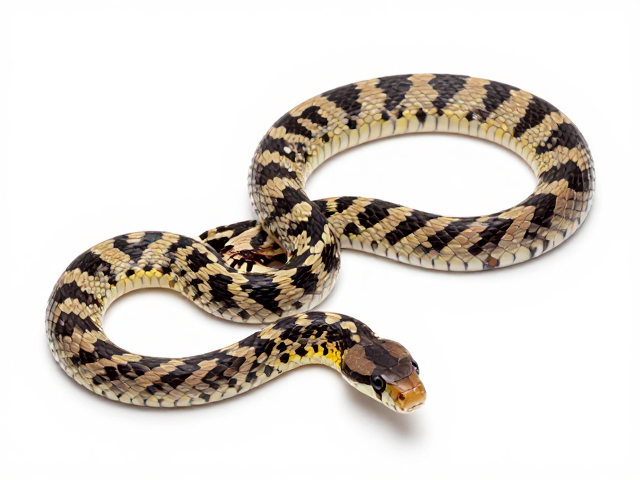
蛇类的体色与图案主要由皮肤表皮中的色素细胞决定,这些细胞包含黑色素、类胡萝卜素和蝶啶等关键色素分子。在野生种群中,基因的自然突变会随机改变色素合成路径中的酶活性或转运效率,从而形成如白化、阿尔博诺(白色)或黄化等独特的表型特征。这些突变通常由单个或多个基因的位点变化引起,例如TYR基因编码的酪氨酸酶活性缺失会导致黑色素无法合成,进而产生缺乏黑色素的白化个体。
选择性育种则是人类基于观赏需求,对携带特定突变基因的个体进行定向繁殖的技术手段。通过识别具有高经济价值或美学吸引力的突变特征,育种者利用孟德尔遗传定律,将分散在不同个体中的优良基因组合到一起。这一过程不仅保留了原始突变带来的独特外观,还通过多代筛选提高了性状表达的稳定性,使得原本在自然界中极为罕见的形态特征得以在人工圈养环境中广泛存在。
揭秘形态突变形成的独特外观特征
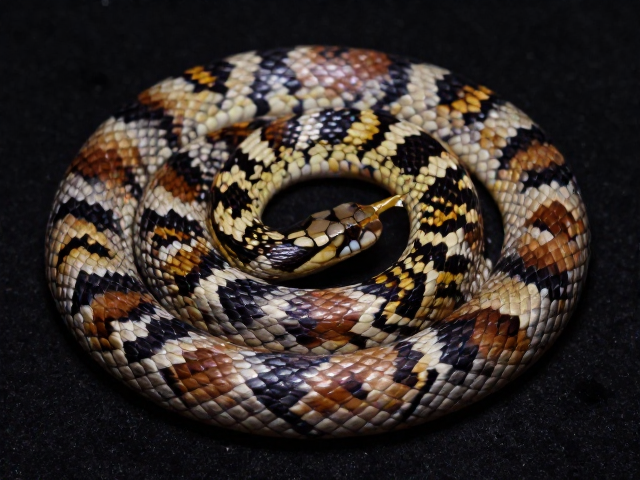
白化症(Albino)是蛇类中最为常见且易于识别的突变类型,其核心特征是完全缺乏真黑色素。由于缺乏黑色素的遮挡,白化蛇的底色通常表现为白色、奶油色或浅黄色,而血管中的血液颜色使得其眼睛呈现鲜艳的红色或粉红色。这种外观特征在玉米蛇、球蟒和猪鼻蛇等物种中经过长期选育,已经形成了多种稳定的品系,如玉米蛇的“暴风雪”(Snow)品系,它结合了白化与黄化两个隐性基因,呈现出纯净的白底红眼效果。
除了色素缺失,色素过度积累或分布异常也会形成独特的视觉特征。例如,“无斑”(Enigma)或“斑马纹”(Zebra)突变会导致蛇身原本复杂的斑纹变得模糊、断裂或呈现特殊的条纹状。在缅甸蟒中,某些突变会导致色素细胞在胚胎发育过程中迁移受阻,形成不规则的色块分布。这些形态上的细微差异,往往由复杂的多基因调控网络决定,使得每一只经过选育的个体在图案细节上都有着独一无二的识别特征。
基因调控机制与表型表达的复杂性
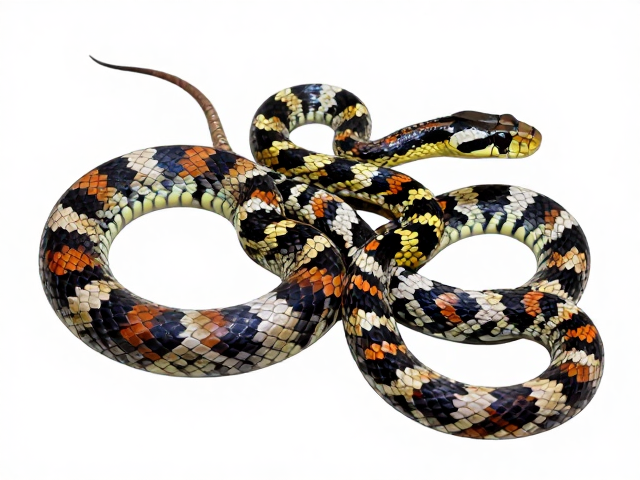
蛇类体色的形成并非单一基因作用的结果,而是涉及多个生化通路的精细调控。以黄化(Pastel)突变为例,它主要影响神经嵴细胞中黑色素的合成效率,而非完全阻断该过程。这种部分功能的改变使得黄化蛇体色中仍保留少量黑色素,导致其底色偏向粉色或橙色,且眼色通常为深红色而非白化蛇的鲜红色。这种细微的生化差异,使得不同突变类型在视觉上呈现出丰富的层次感,而非简单的黑白对比。
此外,图案突变(Pattern Mutations)涉及发育过程中信号分子的浓度梯度变化,决定了色素细胞在胚胎期的定植位置。在蓝眼焦油(Blue Eye Jay)等突变中,除了眼色变化,其身体图案的对称性和边界清晰度也受到显著影响。研究表明,某些图案突变基因会影响Wnt信号通路,进而调控黑色素细胞的分化和迁移路径。这种发育生物学层面的机制,解释了为何某些突变个体在幼体时期与成体时期的体色和图案存在显著差异,也增加了选育过程中预测后代性状表现的难度。
选育策略与遗传稳定性
在实际选育操作中,了解基因的显性与隐性关系是预测后代性状的基础。大多数观赏蛇类中的体色突变,如白化、黄化、无斑等,均遵循隐性遗传规律。这意味着只有当两个携带相同隐性突变基因的个体交配时,后代才会表现出该突变特征。如果两个不同隐性突变基因的携带者(如白化与黄化)交配,其子代可能表现为双杂合子,外观上可能接近野生型或表现出中间代谢特征,但携带齐备的隐性基因库,为后续回交或互交提供遗传基础。
为了获得性状稳定且外观一致的种群,育种者常采用近交系构建或特定品系杂交的策略。例如,通过将具有不同突变特征的个体进行组合繁殖,可以创造出全新的“组合突变”品系。然而,过度近交可能导致遗传多样性降低,引发近交衰退现象,表现为幼体存活率下降或畸形率增加。因此,科学的选育计划需要在追求性状表达的同时,定期引入具有良好遗传背景的个体,以维持种群的健康度和长期稳定性。